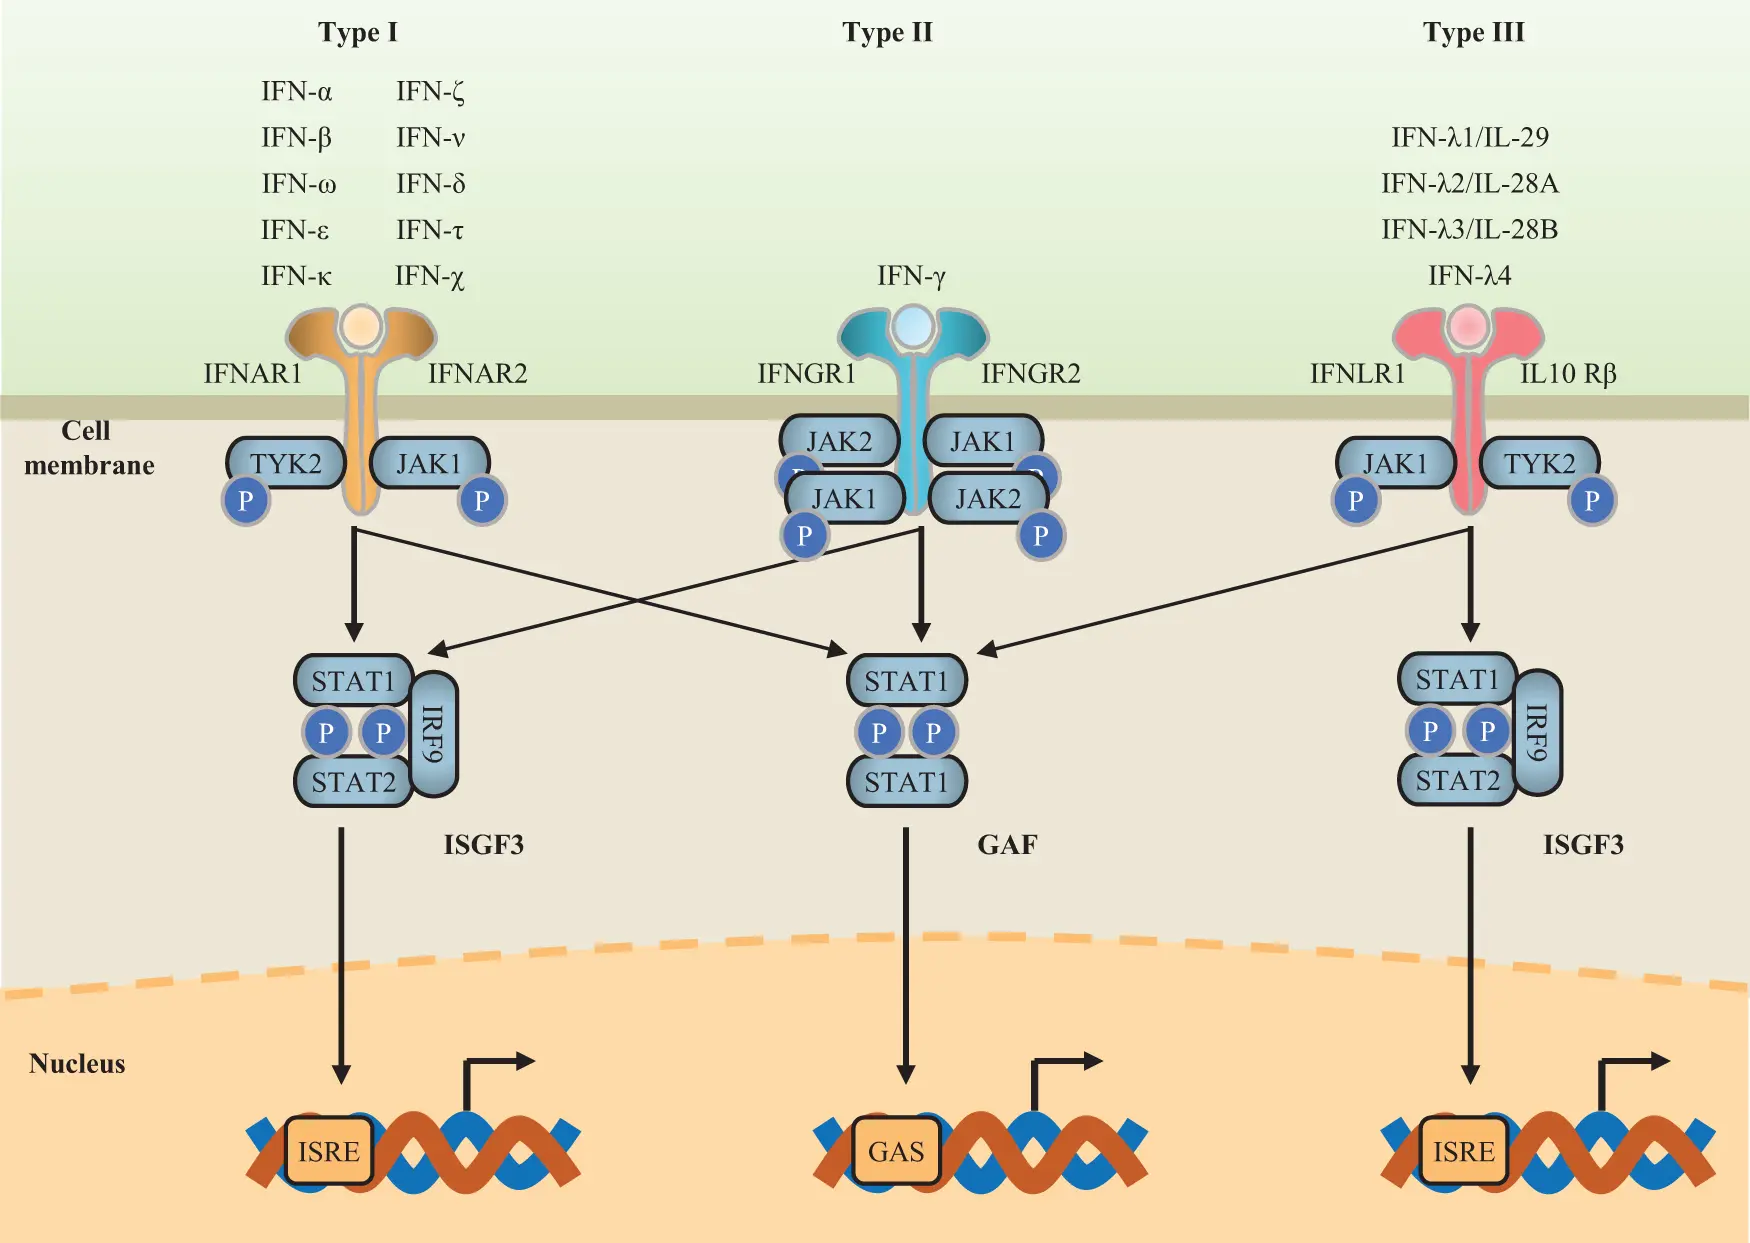
IFN は 3 つのファミリーに分類されます。ヒトにおいて、タイプ I は IFN-α(異なる 13 のサブ型)、IFN-β(IFN-β1 と同義)、IFN-ε、IFN-κ、および IFN-ω を含みます。
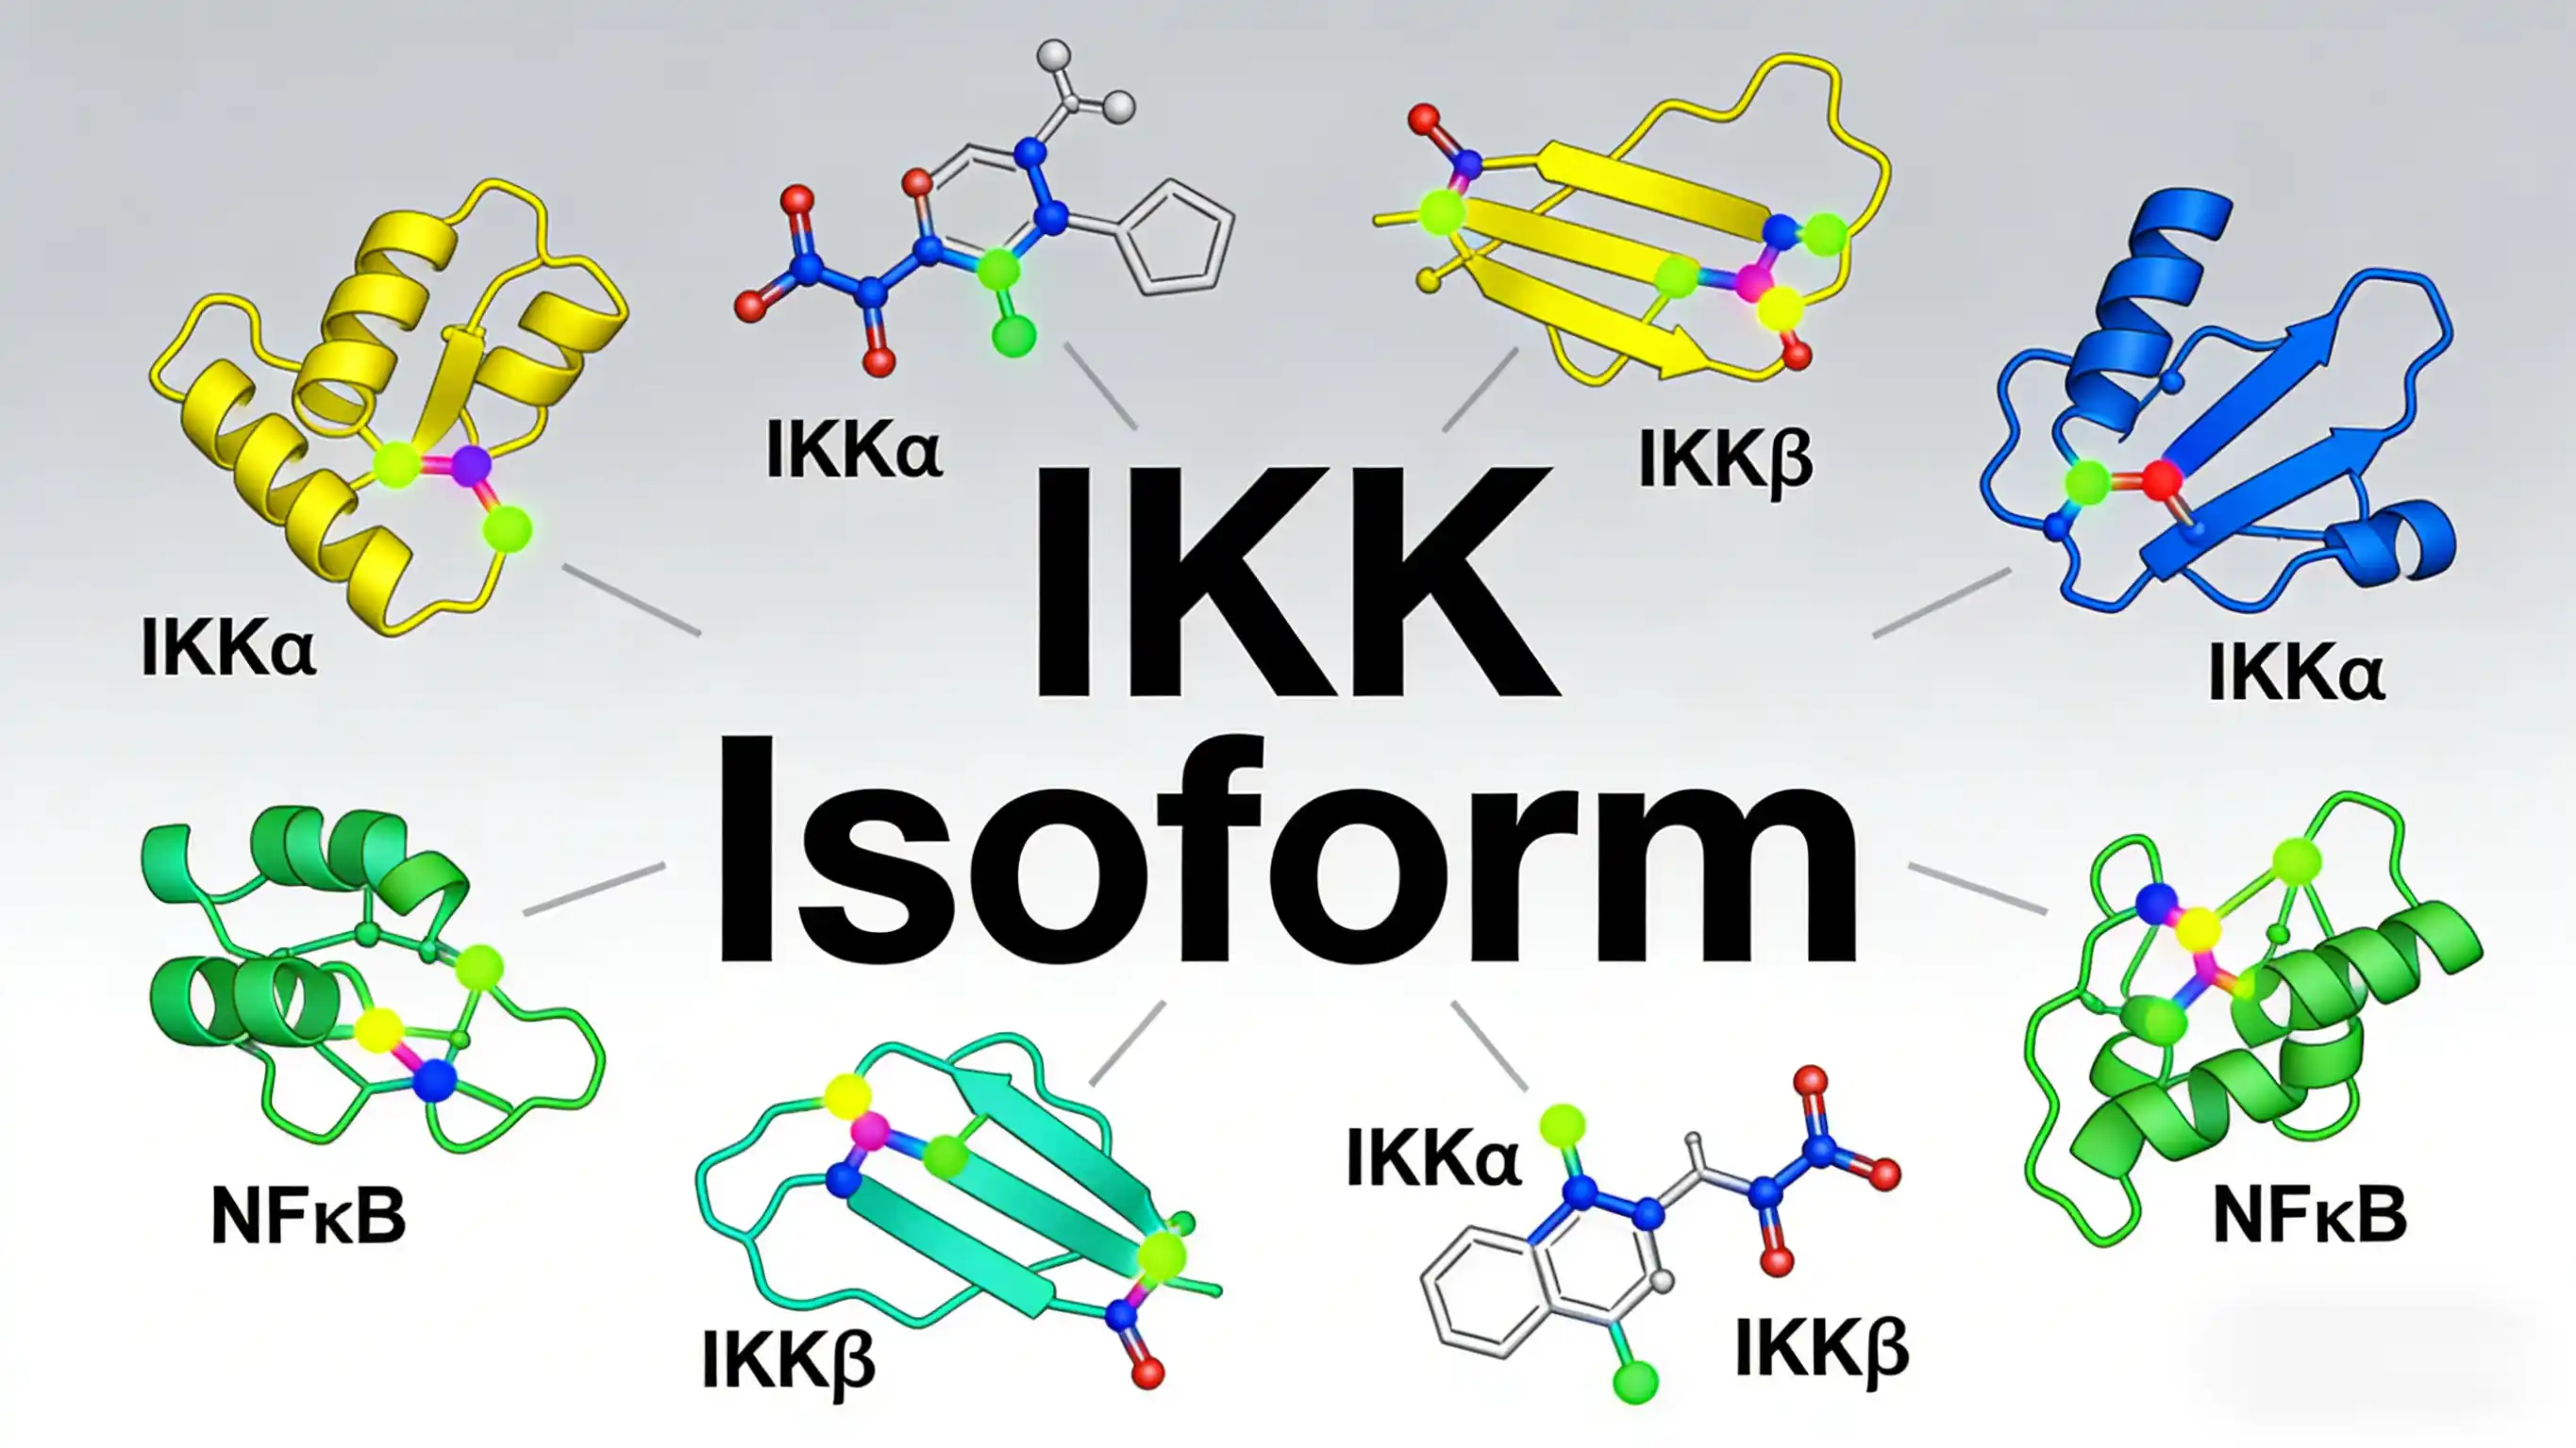
NF-κB/Rel 転写因子は、阻害性 IκB プロテインとの複合体形成により不活性状態で細胞質に存在しています。NF-κB を活性化する大半の作用剤は、IκB のリン酸化誘導によるプロテアソーム依存性分解を介した共通経路によってこれを活性化します。
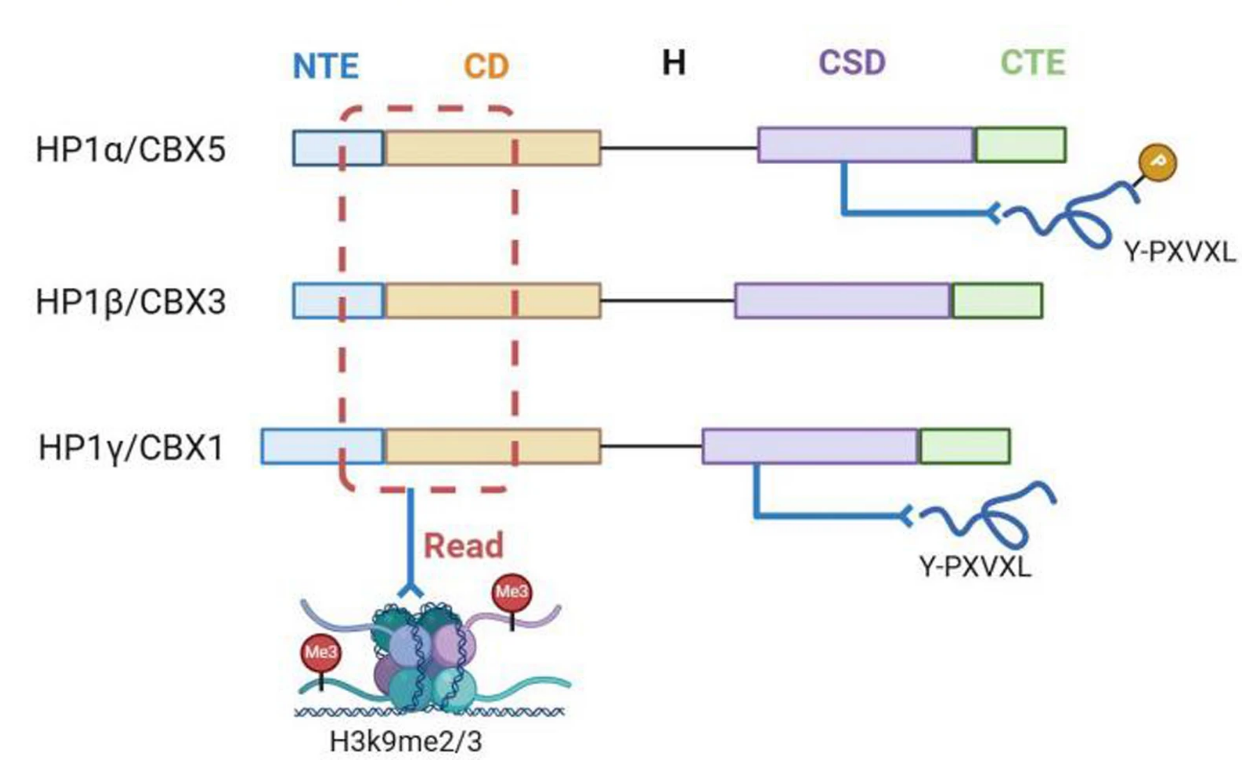
ヘテロクロマチンタンパク質 1(HP1)は、遺伝子沈黙および高次構造に寄与するヘテロクロマチンアダプター分子ファミリーである(1)。
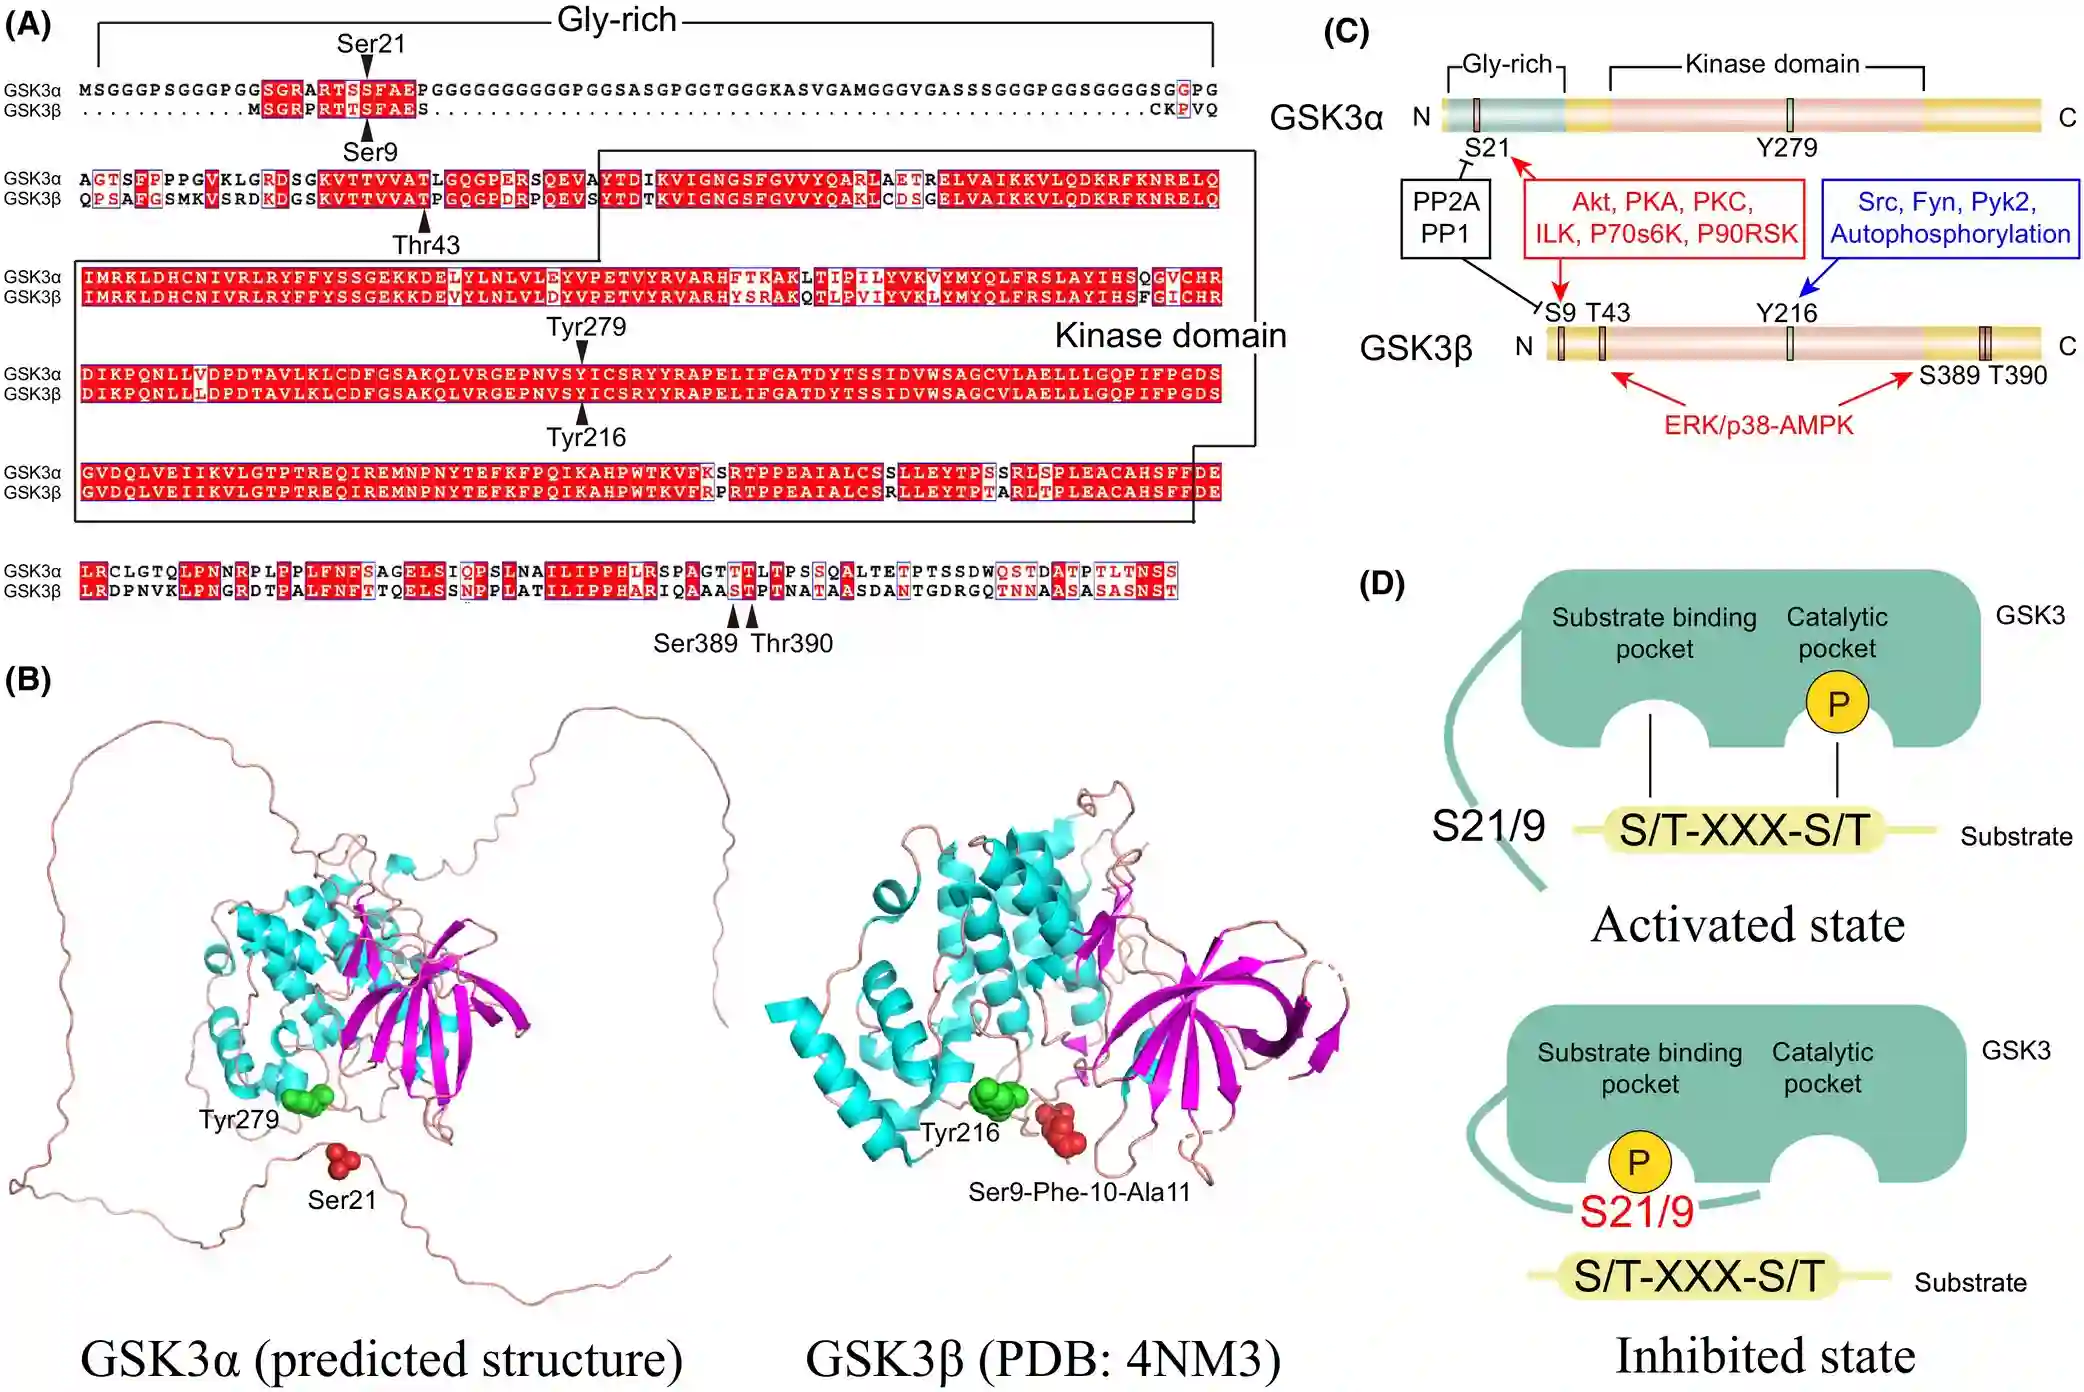
インスリンに応答したグリコーゲン合成を調節する酵素として、グリコゲン合成酵素キナーゼ(GSK-3)は当初同定されました。
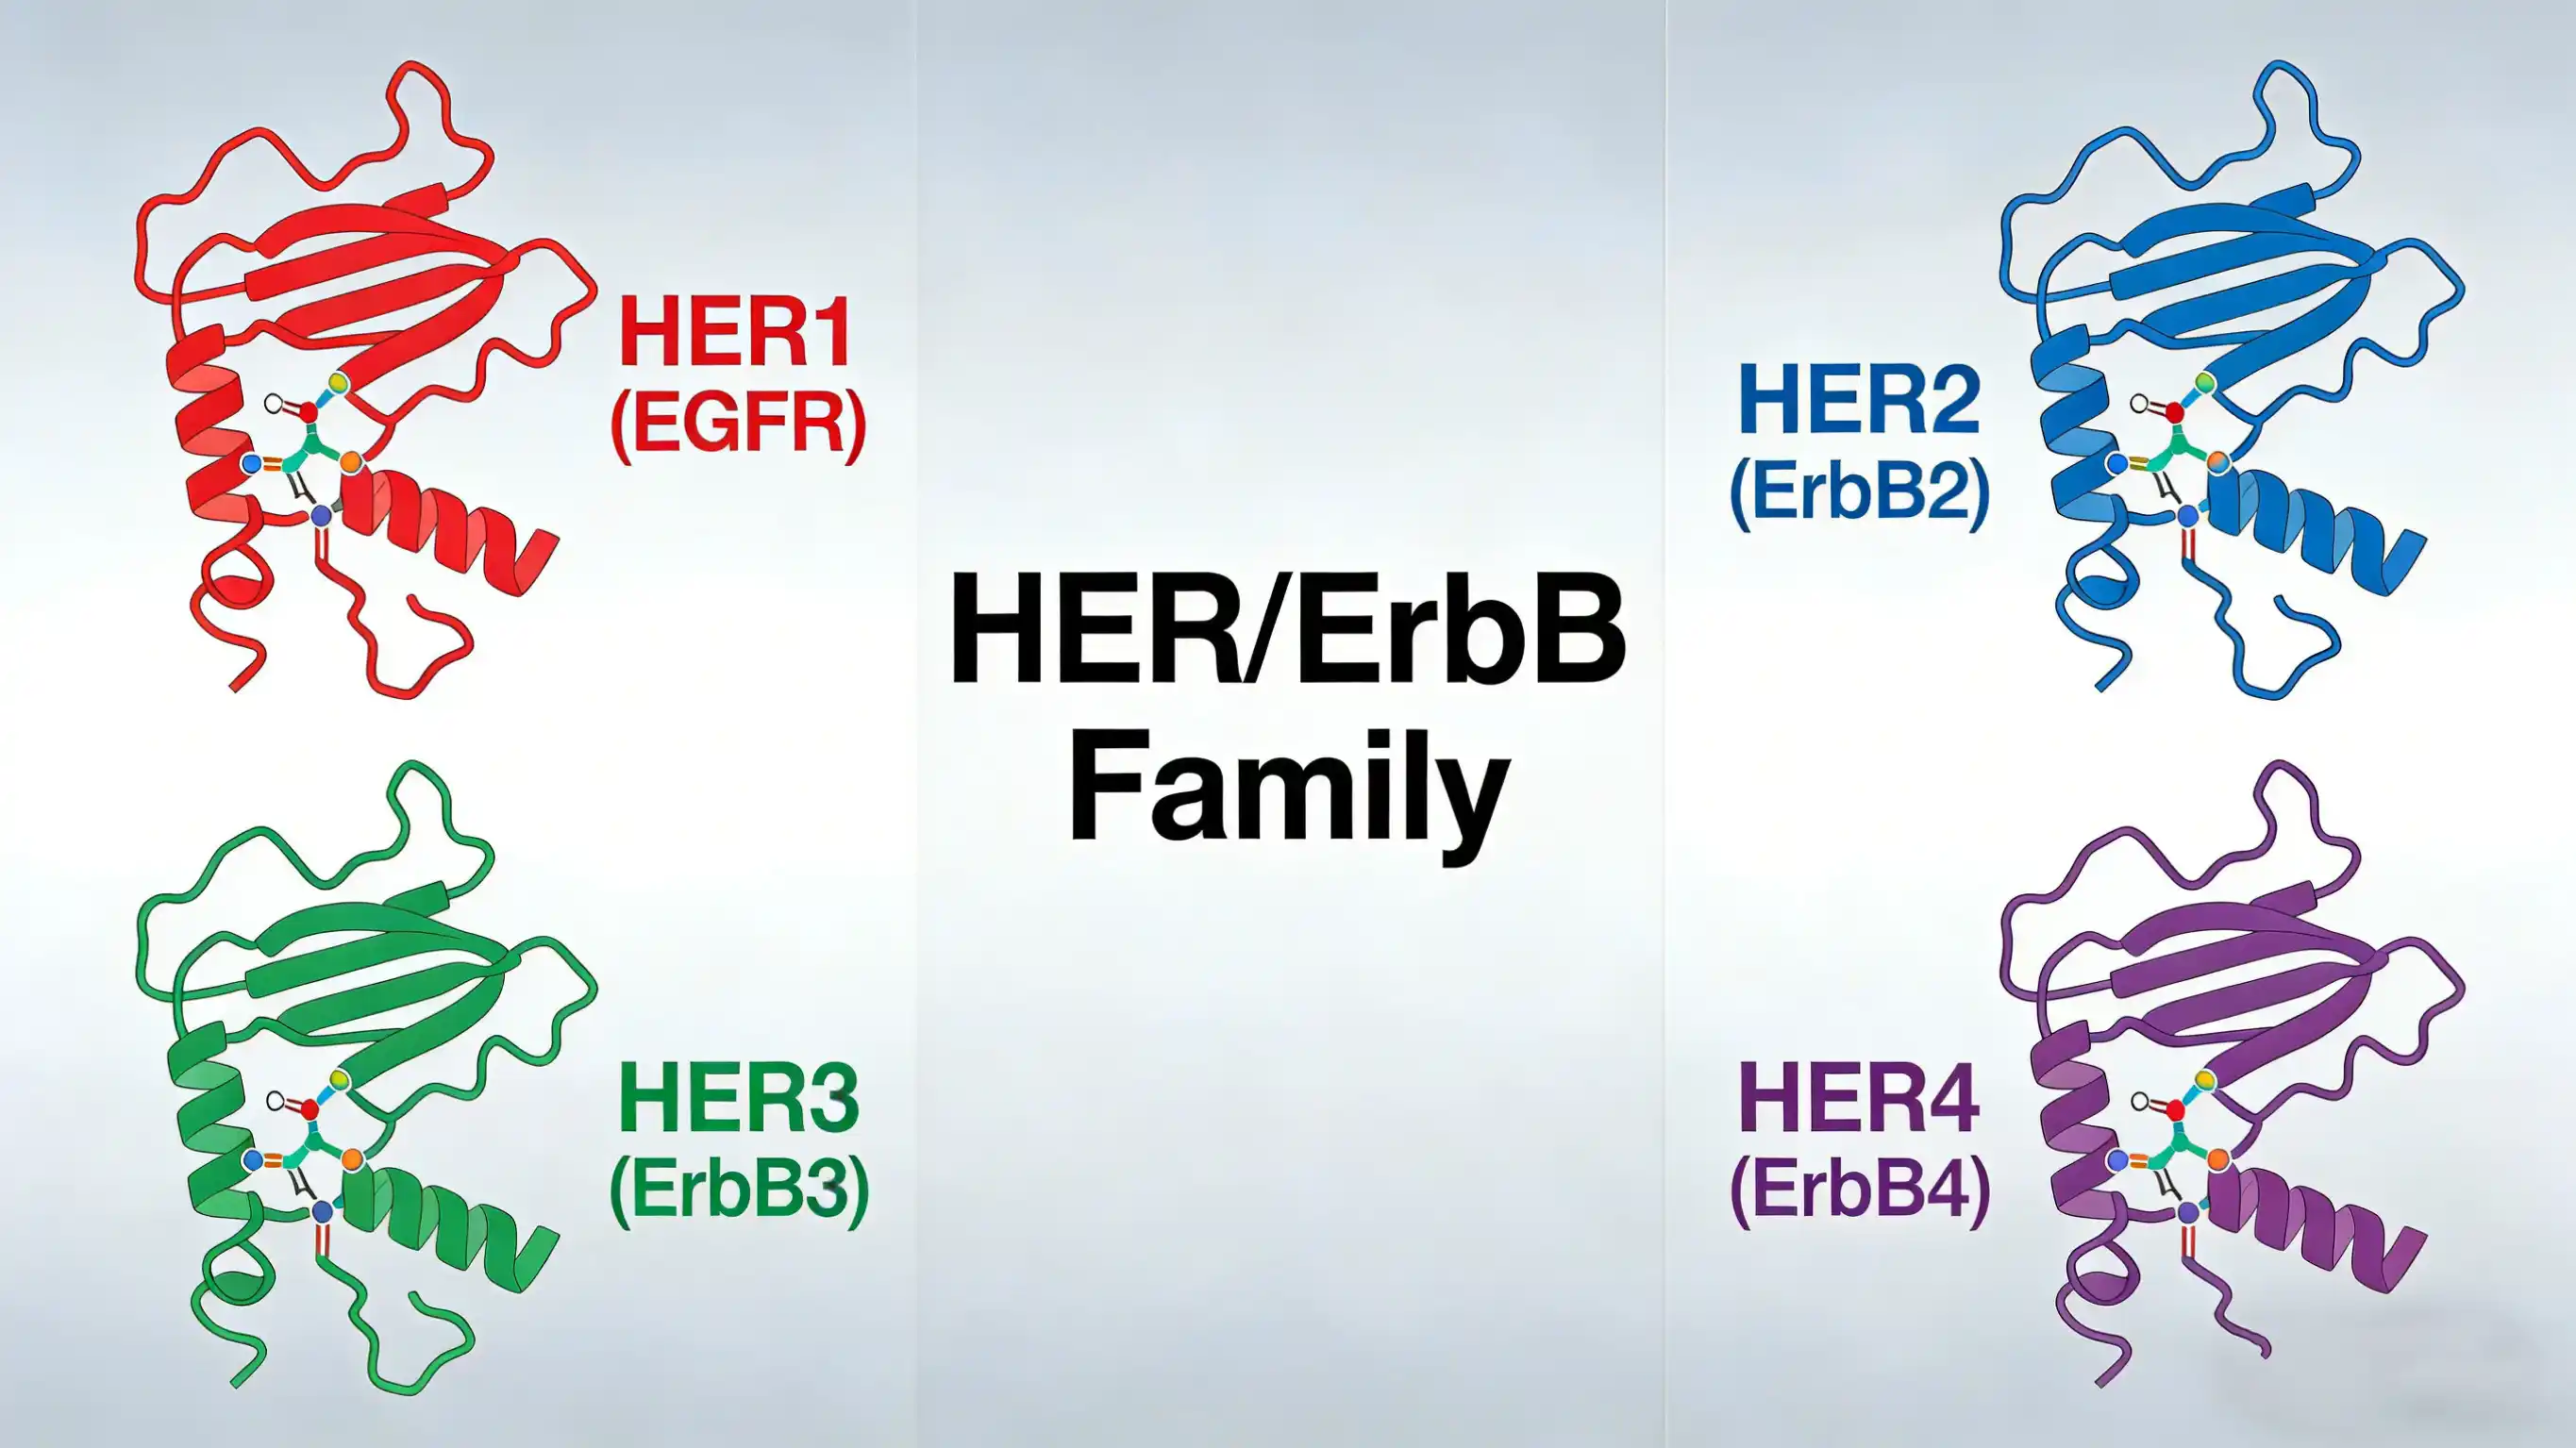
上皮成長因子(EGF)受容体は、HER/ErbB 蛋白質ファミリーに属する膜貫通型チロシンキナーゼである。リガンド結合により受容体の二量体化、自己リン酸化、下游シグナルの活性化、内吞作用、そして溶小体分解が引き起こされる。
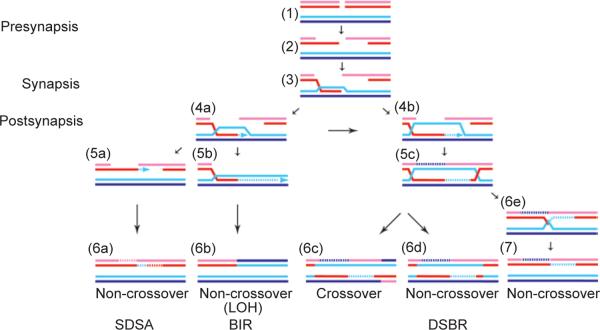
二重鎖断裂(DSB)は、イオン化放射線、放射線模倣化学物質、または DNA 複製阻害剤によって誘発される潜在的な危険な損傷である。
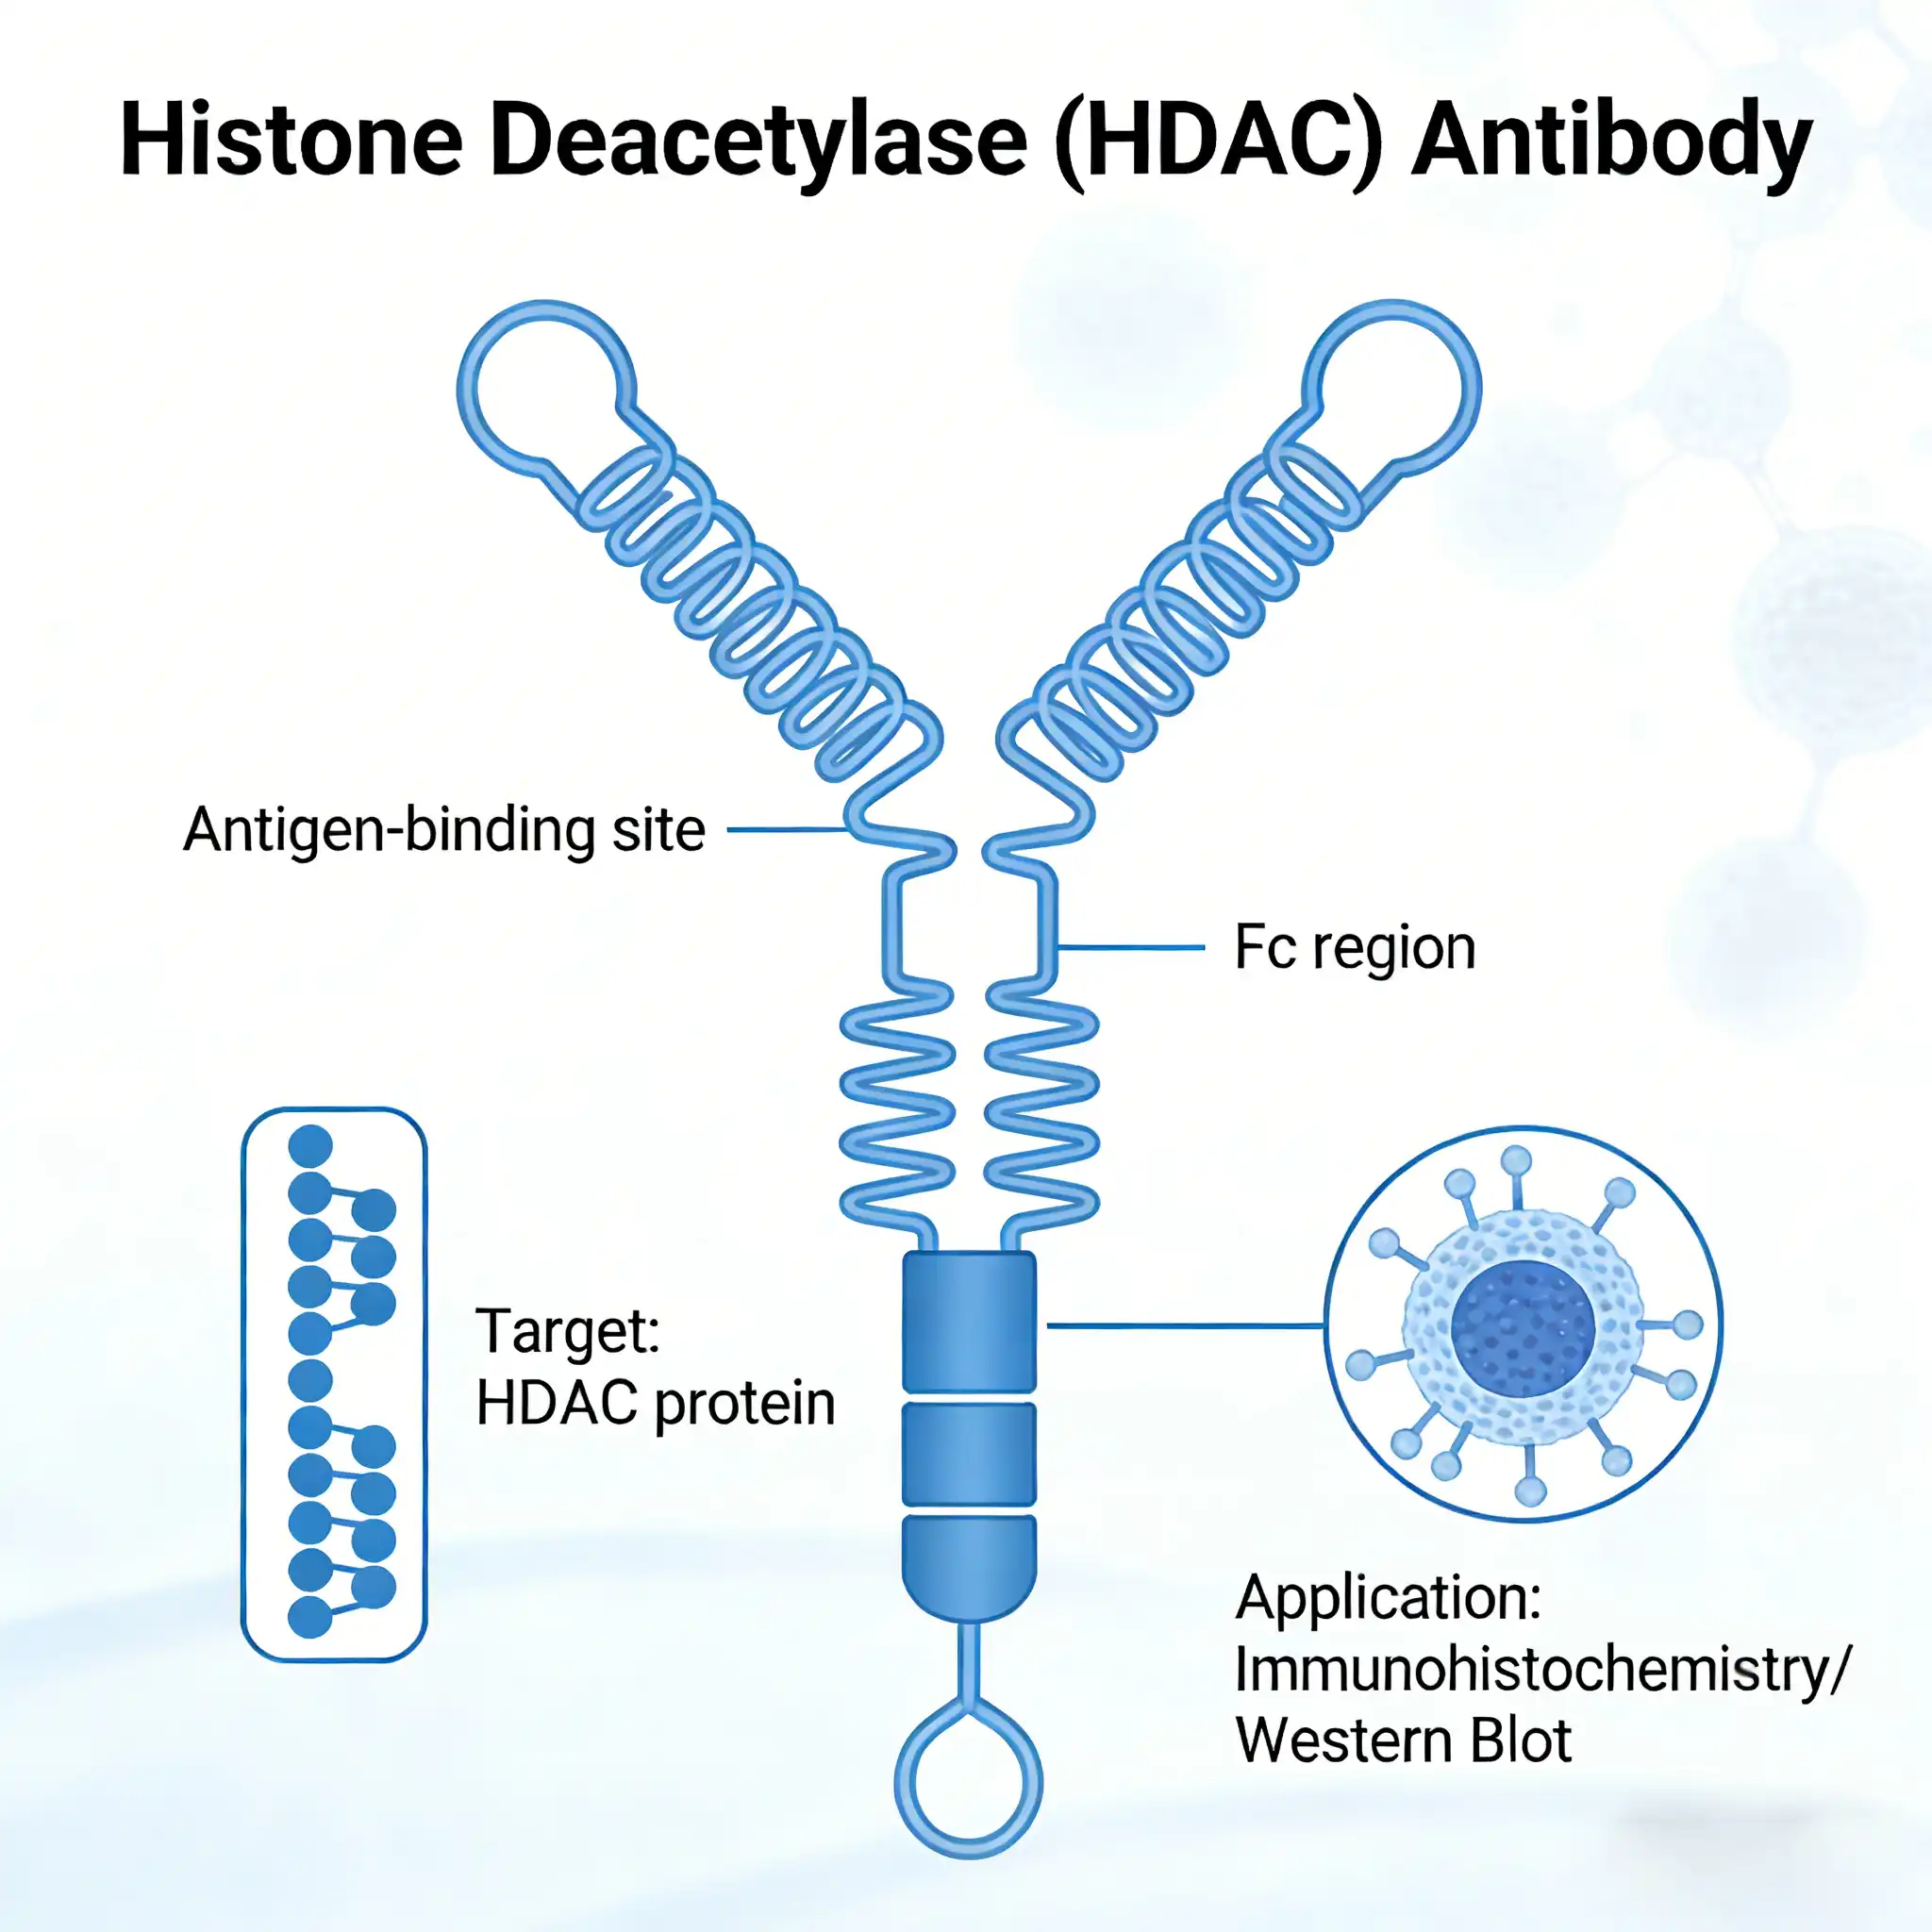
ヒストンテールのアセチル化は、クロマチンを「開放型」の構造へと変化させ、転写因子が DNA にアクセスしやすくなります。ヒストンアセチルトランスフェラーゼ(HAT)とその巨大な多タンパク体複合体の同定は、これらの酵素が転写を調節する仕組みに関する重要な知見をもたらしました (1,2)。
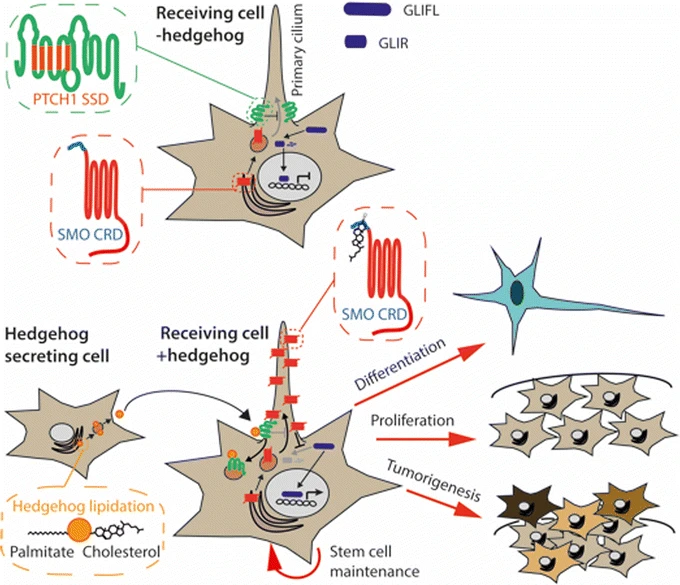
ヒッジホッグ経路を構成する多くの遺伝子は、その後の研究により、さまざまな人類の先天性発達障害および他の病態と関連付けられるようになりました。